Affichage des articles dont le libellé est cladistique. Afficher tous les articles

jeudi 13 octobre 2011

La systématique là où vous ne vous y attendiez pas.


Comme expliqué dans des articles précédents, la systématique est la discipline en biologie qui s'occupe de donner une classification entre les organismes et indique ainsi certaines relations entre eux. Par exemple, pour trois organismes, un chat, un chien et un oiseau, elle nous permettra de dire que les chiens et les chats sont plus proches entre eux qu'ils ne le sont des oiseaux, ce qui est équivalent à dire que les chien et les chats appartiennent à un même groupe (ici mammifères carnivores) auquel l'oiseau n'appartient pas. Oui, les biologistes sont des maniaques mais que voulez vous, avec près de 2 millions d'espèces actuellement décrites et probablement bien plus à découvrir encore, il faut bien mettre de l'ordre là dedans. Mais mettons nous de l'ordre seulement pour que ce soit joli, ou bien cet ordre a-t-il une signification plus profonde ? En fait on utilise en systématique des boites conceptuelles imbriquées les unes dans les autres comme des poupées russes. Cet emboîtement peut aussi être représenté par... Un arbre ! Et cet arbre c'est l'arbre de la vie. Ô joie, cet arbre et ces relations de proximité peuvent être expliqués par l'évolution ! La cladistique est une méthode qui réconcilie systématique (classification) et phylogénie (arbre évolutif). Mais y a-t-il seulement la vie qui évolue ? Tout ce qui évolue peut-il être représenté par un arbre ? A l'inverse tout ce qui est représenté par un arbre est-il issu d'une évolution ? Je ne vous emmènerai pas dans les méandres de cette discussion, ce serait fastidieux, par contre je vais vous parler de quelques cas où on utilise des méthodes de la systématique, en particulier la cladistique, pour expliquer les relations de proximités entre d'autres choses que des êtres vivants. Pour ça il va falloir à chaque fois se demander ce qu'on classe et ce qui permet de classer. En systématique classique c'est simple : on classe des êtres vivants (des individus en général, des groupes d'individus si on veut) et ce qui nous permet de les classer sont leurs caractères morphologiques ou moléculaires (par exemple l'ADN). Ici vous verrez qu'il y aura d'autres choses.

Représentation théorique d’un arbre qui montre qu’on peut représenter un arbre par des boites emboîtées ou comme… Un arbre ! Les deux sont totalement équivalents. Source de l’illustration, modifié très librement de wikipédia (De toute façon je m’en fou, je fait ce que je veux de ces figures c’est moi qui les ai faites !).  Voici aussi un lien vers un site qui représente des arbres comme des boîtes emboîtées : Acanthoweb.

Une des choses à avoir été considérée comme très proche de la façon dont les êtres vivants évoluent et à avoir conduit à pas mal de travaux est la Terre. En fait pas la Terre elle-même, mais ce qu'on appelle les aires biogéographiques. Une aire biogéographique est une zone caractérisé par des groupes d'organismes, c’est donc un concept différent de l’aire géographique qui est définie elle… Géographiquement ! On parle de taxons (= un groupe en biologie) endémiques d'une aire biogéographique. Léon Croizat, qui étudiait justement ce domaine, a répété plusieurs fois que "la Terre et la vie ont évolué de concert". Que signifiait-il par là ? Lorsque la méthode cladistique a été proposée, un certain Lars Brundin en 1966 proposa une hypothèse alors farfelue : la répartition transantarctique des moustiques montrait que certains moustiques fort éloignés géographiquement étaient alors plus proches entre eux qu'ils ne l'étaient de moustiques moins éloignés géographiquement. Mais ne vous en faites pas, cet auteur a travaillé sur des moustiques qui ne piquent pas. Pour vous la réponse vous semble peut-être évidente "les continents on bougés séparant les moustiques pourtant apparentés"... Mais à cette époque la dérive des continents était encore mal acceptée et pourtant ce résultat était une belle preuve. Mais on préférait prendre en compte les données des physiciens pour que la communauté scientifique accepte la dérive des continents. Comprenez, la preuve par la physique est plus glamour que la preuve par le moustique (qui ne pique pas en plus) ! On s'est alors rendu compte que certaines zones biogéographiques avaient plus de groupes d'organismes en commun, qu'elles étaient plus proches entre elles que d'autres quelle que soit la distance géographique. Ainsi on pouvait représenter les relations entre zones biogéographiques par un arbre de parenté ! Ceci s'explique en partie par le fait que les continents dérivent les un par rapport aux autres... Mais pas seulement ! Une zone biogéographique peut-être séparée par une rivière par exemple ! Alors ici qu'est-ce qu'on classe ? Ben on classe entre elles les aires biogéographiques et ce qui permet de les classer ce sont les organismes présents dans cette aire : plus deux organismes sont proches par rapport à d'autres et plus deux aires sont proches par rapport à d'autres...

Une figure tirée de Brundin 1966 qui montre comment il fait une correspondance entre les relations de parentés entre moustiques et les aires biogéographiques… Comme quoi de si petites bêtes nous renseignent sur quelque chose d’une ampleur gigantesque…

Restons encore dans la biologie, voulez vous bien, et voyons encore un autre cas assez particulier. Nous, les êtres vivants, sommes le produit d’un grand nombre de réactions chimiques. L’ensemble des mécanismes de formation et de dégradation de molécules chez les êtres vivants est appelé métabolisme. Le métabolisme est un des cauchemars de beaucoup d’étudiants en biologie. C’est une espèce de sac de nœud moléculaire avec des flèches partout où  les molécules semblent se battre telles des barbares dans un énorme fouillis pour avoir justement le nom le plus barbare. On parle de voie métabolique pour un ensemble de réactions métaboliques. Pour avoir un produit F à partir de A on va pas faire ça en une étape (ce serait trop simple) mais en plein d’étapes, par exemple A->B->C->D->E->F… C pouvant donner aussi  G puis H puis F aussi pour compliquer un peu par exemple. Une suite de réactions est appelée « voie métabolique ». La réaction d’une étape à l’autre est produite grâce à une molécule, une « enzyme ». Par exemple on passe de A à B grâce à eA. A->B est une réaction enzymatique et eA est l’enzyme. En général les enzymes sont disciplinées (contrairement aux étudiants) et elles n’interagissent pas avec n’importe quoi. Mais au final tout cela fonctionne très bien et aussi confuse que puisse être une réaction métabolique dans la tête de l’étudiant, nous sommes là et nous vivons. Les réactions métaboliques sont si complexes qu’elles sont souvent invoquées par les créationnistes pour nous rappeler que tout ça est trop complexe pour être apparu par évolution. Du coup à écouter un créationniste, on devrait penser qu'il ne devrait pas être possible de reconstituer une quelconque évolution là dedans. Et pourtant : une voie métabolique est une série très particulière, et certaines se ressemblent plus que d’autres (simplement parce qu’elles peuvent commencer de la même manière). De plus elles sont caractérisées par des réactions enzymatiques très particulières. L’idée est venue donc de classer entre elles les voies métaboliques en utilisant les réactions enzymatiques voir les enzymes elles même. Lecointre et Chunchillos s’y sont aventurés et ont obtenu quelque chose de cohérent. Au final il paraît normal de penser que les voies métaboliques se sont diversifiés et ont évoluées les une à partir des autres ! Ainsi on reconstruit l’évolution de ces voies métaboliques en reconstituant quelles étaient les premières réactions enzymatiques et quelles sont les plus récentes.

Une figure montrant avec brio deux choses : d’une on peut faire de la phylogénie avec des voies métaboliques, de deux, le métabolisme c’est compliqué >_< Cliquez sur l’image pour l’agrandir sinon vous ne comprendrez rien (en l’agrandissant c’est possible que vous ne compreniez pas plus !). (Source de l’image : Lecointre G. et Cynchillos C. 2005.  Integrating the Universal Metabolism into a Phylogenetic Analysis. Molecular Biology and Evolution, 22 : (1).)

Sortons enfin de la biologie. Contrairement à la systématique des voies métaboliques, ici l’idée d’un parallèle entre l'évolution des langues et l'évolution des êtres vivants est venue très vite. Darwin lui même dans son ouvrage majeur : « l’Origine des Espèces », utilise de manière pédagogique l’exemple des langues et dit : « Les divers degrés de différence entre les langues dérivant d’une même souche devraient donc s’exprimer par des groupes subordonnés à d’autres groupes ». Comment procède t’on pour obtenir un arbre des langues ? On peut diviser une langue en entités minimales ou « phonèmes » c’est grâce à ces phonèmes que l’ont peut classer les différentes langues. On va faire l’hypothèse qu’un phonème en commun indique une parenté entre des langues. Les langues se transmettant entre les cultures, on peut alors supposer que deux langues provenant d’une même culture sont plus proches entre elles qu’une langue provenant d’une autre culture. En soit l’idée est assez intuitive, Hoenigswald, un auteur sur le sujet, va même jusqu’à dire que la linguistique comparée est par nature une méthode cladistique. Dernièrement, en 2003, une phylogénie des langues est parue en utilisant même des méthodes assez complexes utilisant des probabilités (ces méthodes diffèrent dans leur fonctionnement de la cladistique mais ont tout comme cette dernière la prétention de donner des arbres de parenté évolutive) et datant l’apparition les groupes de langues. Au final, si on considère les langues latines comme des langues provenant du latin alors le français, l’italien, l’espagnol sont du latin ou sinon… Le latin n’existe pas !

Voici un arbre des langues effectué en analyse bayésienne (pour ceux qui connaissent). Ce qui est très intéressant dans celui ci c’est que les groupes de langues sont datés en rouge ! On peut rester sceptique sur les datations mais c’est quand même super classe ! N’hésitez pas à cliquer sur l’image, certaines zones sont intéressantes ! (Source de l’illustration : Gray et Atkinson 2003.)

Nous allons maintenant aller un petit peu plus vite et évoquer assez brièvement trois autres cas de figure :

On peut utiliser la cladistique pour comparer des textes anciens. C’est assez simple : si une erreur est introduite, elle sera transmise de copie en copie. Deux textes ayant la même erreur seront donc plus proches entre eux qu’un texte n’ayant pas cette erreur (mais cet autre texte peut en avoir d’autres hein) ! La discipline dessinant des arbres en analyse textuelle a même un nom : la stemmatique et son apparition est attribuée à Karl Lachmann en 1850. 

Un autre domaine assez étonnant est la phylogénie d’objets culturels. En 2007, Ilya Tëmkin et Niles Eldredge (Eldredge, le même qui a établi la théorie des équilibres ponctués avec Gould pour ceux qui connaissent !) produisent… une phylogénie des instruments de musique ! Là on classe les différentes formes d’instruments entre eux en utilisant les différentes forme des différents éléments de ces instruments. Un objet culturel étant transmis par tradition ou apprentissage de génération en génération on peut penser que deux instruments issus d’une même tradition seront plus proches entre eux que d’autres !

Figure montrant la phylogénie de Psaltérion Baltiques… A vrai dire je ne connaissait même pas l’existence de cet instrument ! C’est un instrument de musique à cordes…  (Source : Tëmkin et Eldredge 2007.)

Et le domaine à mes yeux le plus étonnant est l’astrocladistique ! C’est à dire retracer l’évolution des galaxies ! Ici ce seront les caractères « morphologiques » et physiques qui seront pris en considération : prédominance de certains atomes, forme, type de rayonnement, etc. Cela laisserait-il supposer que les galaxies descendent les unes des autres ? Sinon cette démarche n’aurait pas de raison d’être… Peut-être pas ! On pourrait penser que les galaxies se « développent » (bébé galaxie deviendra grande dans 3 milliards d’années…) et suivent selon leur développement certaines trajectoire acquerrant ainsi de manière cohérente certaines propriétés. Par exemple les galaxies très lourdes ne pourraient avoir que certaines formes et les galaxies petites que certains éléments en plus grande quantité. Enfin, à vrai dire je reste personnellement un peu sceptique sur la pertinence de cette méthode mais ça reste super intéressant et innovant !

Phylogénie des galaxies naines de l’amas local… L’image est jolie, c’est de la phylogénie : j’aime ! (Source de l'image : Astrocladistique)

Au final la question qu’on peut se poser est : est-ce que l’on peut finalement faire de la phylogénie avec tout et n’importe quoi ? Oui, la phylogénie fonctionne grâce à un algorithme sur ordinateur. Il suffit de donner à manger à cet algorithme et il en ressortira forcement quelque chose. Maintenant est-ce que faire de la phylogénie avec n’importe quoi a un sens ? Probablement pas, donner à manger du pas bon à l’algorithme et normalement il aura la diarrhée et fera quelque chose de pas très intéressant… Et ça ça marche aussi en phylogénie des organismes : si les caractères sont mauvais, la phylogénie n’aura pas de sens…

Et puis pour le fun cous pouvez aussi jeter un œil à la phylogénie des êtres fantastiques faite par JP Colin ! J’ai aussi fait avec quelques camarades… Une phylogénie des alcools ! L’algorithme cette fois ci, après trop d’alcool, nous a vomi quelque chose d’un peu étonnant mais c’est amusant à regarder ! Réfléchissez-y lors de votre prochaine soirée bien arrosée !

Et une dernière touche pour la fin : à gauche une phylogénie des êtres fantastiques par JP. Colin (source de l’image : 1ère classification phylogénétique d'Heroic Fantasy (2/2)), à droite une phylogénie faite avec mes mimines (grâce à mon ordi quand même) de quelques alcools. Vous admettrez que le résultat est quelque peu surprenant… Cliquez sur l'image pour agrandir !

Pour aller plus loin :

-Brundin L. 1966. Trans-Antarctic relationships and their significance, as evidenced by chironomid midges. K. svenska Vetensk.-Akad. Handl., 4 (11): 1-472.
-Les mondes darwiniens, L’évolution de l’évolution, coordonné par Heams T., Huneman P., Lecointre G. et Silbersetin M. 2009. editions Syllepses.
- Lecointre G. et Cynchillos C. : L’exportation de la pensée phylogénétique en biochimie.
-Mahé Ben Hamed : La linguistique historique, nouveau terrain d’éxpérimentation.
-Platnick N. I. et  Don Cameron H. 1977. Cladistics Methods in Textual, Linguistic and Phylogenetic Analysis. Systematic zoology. 26 : (4), 380-385.
-Gray R. D. at Atkinson Q. D. 2003. Language-tree divergence time support the Anatolian theory of Indo-European origin. Nature, 426, 435-439.
-Fraix-Burnet D. 2009. Galaxies and cladistics. Evolutionnary biology, Concept, Modelization and Application, editions Springer, p 363-378.
-Tëmkin T. et Eldredge N. 2007. Phylogenetics and Material Cultural Evolution. Current Anthropology. 48 : (1), 146-153.
-Deux très bons articles du blog de M. Colin qui s’essaye à la phylogénie des êtres fantastiques ! 1ère classification phylogénétique d'Heroic Fantasy (1/2) et 1ère classification phylogénétique d'Heroic Fantasy (2/2)

dimanche 25 septembre 2011

La phylogénie animale, une affaire pleine de rebondissements.


Certains voient peut-être la zoologie comme une vieille discipline qui a fait son temps. L’étude de la morphologie elle aussi est vue parfois comme une ancienne discipline. La majorité des observations sur les animaux auraient été faites. C'est tout à fait l'inverse, beaucoup de mystères subsistent et beaucoup de choses sont découvertes encore comme de nouveaux groupes d'animaux inconnus. Mais une chose passionnante est l'impact de la phylogénie. En effet, l'interprétation de la morphologie et des relations évolutives entre animaux change totalement selon l'arbre des animaux qu'on prend en compte. Je vais essayer de vous présenter brièvement quelques grands changements dans cette aventure intellectuelle...

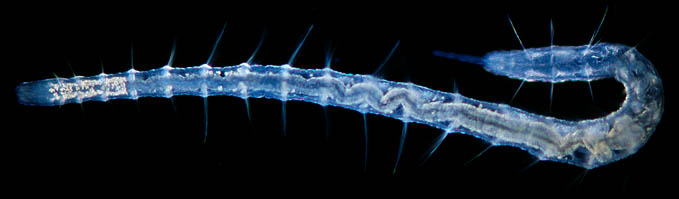
Parlons déjà du mystère des Siboglinidae. Vous avez peut-être entendu parler des vers Vestimentifères, ce sont des Siboglinidae. Les vestimentifères sont de grands vers des abysses avec une amusante touffe rouge à l’avant et qui vivent en symbiose avec des bactéries sulfuriques. Pendant longtemps on a rapproché ces animaux des échinodermes (les échinodermes comprennent entre autre les étoiles de mer et oursins) et des entéropneustes (comprenant le balanoglosse ou « ver-pénis » voir l'article sur les animaux obscènes). Cela était bien argumenté grâce à la structure du système nerveux, la position des organes reproducteurs et le développement. Autant dire que les arguments envoyaient du pâté. Mais en 1964 une drôle d'observation vint mettre le fouillis là dedans : jusqu'alors la partie postérieur (l’arrière, le cul quoi) de ces vers n’avait jamais été observée. Et c'était quasiment sans appel, cette partie postérieure était clairement celle d'une annélide. Les annélides vous les connaissez, le ver de terre en est une. Cette partie postérieure portait des « poils » (ou soies) et était constituée d’anneaux comme ce qui est communément le cas chez les annélides. Or cette organisation ne se retrouve pas sur le reste du corps des Siboglinidae. Mais les zoologistes sont de petits têtus et certains négligèrent cette observation. Plus tard elle fut progressivement mieux acceptée et maintenant les zoologistes en mettraient leur main à couper, les Siboglinidae sont des annélides ! La ré-interprétation de la morphologie mais aussi les arbres obtenus grâce à l'ADN coïncident finalement. Réinterprétation de la morphologie ? Mais elle n'indiquait pas ça au départ pourtant ! Certains zoologistes ont ré-étudié avec plus d'attention les même caractères pour se rendre compte que... Par exemple le système nerveux qui était supposé dorsal (comme chez nous et les entéropneustes, les vers-pénis) est en fait ventral ! Un beau retournement de cerveau pour un beau retournement de situation ! Notez qu'au sein des animaux à deux côtés (bilatériens) avec un avant et un arrière, les Siboglinidae ont fait un voyage considérable d'un bout à l'autre de l'arbre. Toutes ces histoires pour un bout de cul... Finalement les histoires de phylogénie ne sont pas si différentes des histoires d'humains : on en revient toujours en dessous de la ceinture !

Sibolinidae et annélides : en haut à gauche, des vers vestimentifères (source de l’image : vers vestimentifères). En haut à droite un dessin de l’opisthosome perdu des Siboglinidae… Leur cul quoi pour faire moins classe (source de l’image : Pleijel et al. 2009). En bas une photo d’une annélide. Remarquez la structure répétée et la présence de « soies ». (Source de l’image : joli clitellate)

Les xenoturbellides représentés par le genre Xenoturbella ont eu quand à eux une drôle d'histoire. Ils se sont beaucoup baladés dans la phylogénie. On a d'abord pensé à des plathelminthes. Les plathelminthes sont des vers plats sans beaucoup de caractéristiques anatomiques bien évidentes, il faut le dire. Qu'à cela ne tienne alors, faisons-en une grande poubelle zoologique et mettons-y joyeusement n'importe quoi ! Ce fut le cas des Xenoturbellides que l'on mit à la « poubelle platheminthique ». Mais l'argumentation ne s'est pas arrêté là, l'observation en détails des cils sur leur surface corporelle confirmait un rapprochement avec les plathelminthes. D'autres auteurs plus fougueux remirent ça en cause : non, les xenorturbellariés ont une position cruciale, ce sont les plus proches parents des bilatériens (les animaux avec deux côtés). Position très importante car ils nous renseignent sur l'origine de ce groupe auquel nous appartenons (c'est toujours plus important quand ça concerne l'homme...). Mais l’étude de la morphologie était limitée sur ces organismes d'apparence simple, l'ADN lui devait nous révéler la vérité... En fait les xenoturbellides seraient carrément des mollusques ! Bivalves, comme les moules ! Dont le développement s'arrêterait à des stades très jeunes. D’ailleurs le développement lui même semblait coïncider avec ça ! Finalement l'histoire n'est pas tellement différente des celle des Siboglinidae, ils se retrouvent dans un groupe bien connu. Ce résultat était pourtant étonnant. Bien trop même... En fait les xenoturbellides se nourrissent de mollusques et c'était l'ADN de mollusques qui avait été séquencé. Retour alors à la case départ. Mais d'autres analyses de l'ADN montrent aujourd'hui que les xenortubellides sont en fait pour leur part proches des échinodermes (étoiles de mer, oursins) et hémichordés (comprenant, je vous le rappelle, ça ne fait pas de mal, le ver-pénis ). Finalement ils se retrouvent exactement là où étaient les Siboglinidae au départ !! La phylogénie c'est un jeu de chaises musicales et au final les xenoturbellides prennent la place des Siboglinidae. Position par ailleurs fort intéressante, résolvant les mystères de la morphologie bien pauvre des xenoturbellides. A ce point ? Les morphologistes avaient déjà en fait très fortement soupçonnés cette position, sur des caractères assez précis... Finalement, nous mêmes sommes aussi plus proches des echinodermes que des annélides. Les xenoturbellides seraient finalement plus proches de nous que des plathelminthes...

A gauche une image de Xenoturbella (source de l’image : Xenoturbella). A droite une étoile de mer (source de l’image : étoile de mer). Oui, les deux ne se ressemblent pas (remarquez qu’en fait les deux ne ressemblent pas à grand chose en général) mais ils sont plus proches entre eux qu’ils ne le sont des vertébrés. Et nous les vertébrés sommes plus proches d’eux que nous le sommes des poulpes ou des insectes !

Les myxozoaires ont été eux considérés pendant un certain temps comme des "protozoaires" c'est à dire des êtres unicellulaires. En tout cas des organismes qui ne sont ni des animaux, ni des plantes, ni des champignons, ni des bactéries (sympa comme définition hein ?). Pourtant ces organismes ont plusieurs cellules. Pourquoi cette injustice ? A cause du mode de reproduction par spores inhabituel chez les animaux et d’une structure très simple. Ces organismes parasites de vertébrés aquatiques (ben sur ce blog le mot "poisson" est interdit ! ) et d'autres organismes ont deux cellules avec un harpon au bout d'un lasso qu'elles peuvent dévaginer (éjecter) pour ralentir leur chute dans le tube digestif de l'organisme qu'ils parasitent... Peut-être que certains amateurs de zoologie passant par là auront pensé à un certain groupe d’animaux... D'autres organismes ont des cellules qui ont un lasso à harpon, les cnidaires. Vous en avez fait probablement la piquante expérience, les méduses étant des cnidaires. Les myxozoaires se sont donc retrouvés classés chez les cnidaires, ce sont finalement des animaux proches des méduses. Mieux même, on saurait les placer précisément au sein des cnidaires. Et ils seraient d'ailleurs proches d'autres cnidaires parasites. Cependant le cheminement n'a pas été aussi simple. Si on a longtemps hésité à les considérer comme des animaux, les premières analyses utilisant l'ADN les ont très vite identifié comme des animaux mais plus proches des bilatériens que des cnidaires malgré les cellules à harpons (comme, on la pensé pour les xenoturbellides, la proximité des bilatériens est une place convoitée…). La découverte d'un myxozoaire à la forme d'un ver vint apporter de l'eau au moulin de cette hypothèse, en effet, fondamentalement, les animaux bilatériens avec un avant et un arrière sont des vers (oui, vous lecteurs, vous êtes des vers !). D'autres analyses de l'ADN vinrent ensuite réfuter cette hypothèse et revinrent à l'idée que les myxozoaires sont bien des cnidaires parasites. Imaginez cependant : un organisme qui n'était au départ pas considéré comme un animal se retrouve finalement bien identifié comme appartenant à un sous groupe d'animal et même à un sous groupe de ce sous groupe d'animal. Ca en fait un voyage conceptuel !

En haut à gauche des myxozoaires… Dur de penser à des méduses très modifiées ! (source de l’image : myxozoaires qui r’semblent à rien). En bas à gauche le myxozoaire en forme de ver : Buddenbrockia plumatellae ! Celui qui a mené les zoologistes sur une fausse route (source de l’image : Buddenbrockia plumatellae le fourbe). A droite, une méduse du genre Clytia, probablement plus proche des myxozoaires que des méduses que vous connaissez et qui vous piquent sur la plage… Pourtant elle leur ressemble bien plus (source de l’image : Clytia la tite méduse).

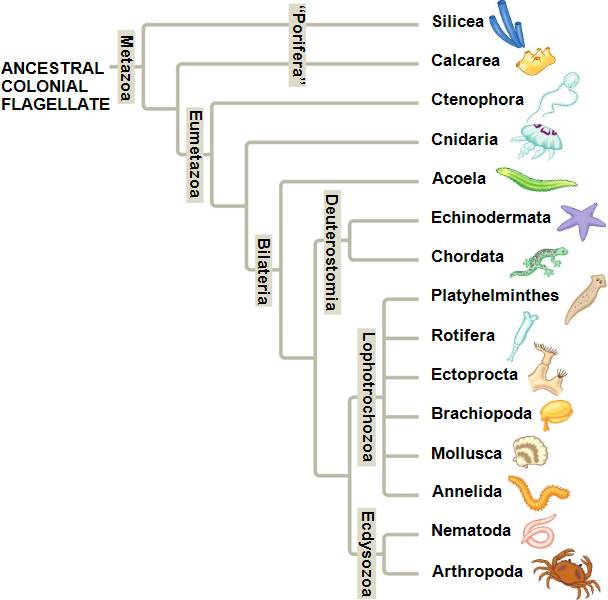
Jusque là je vous ai parlé de sous groupes d'animaux qui se baladaient, comprenant pour ceux-là quelques espèces chacun. Mais il y a des remaniements bien plus importants. Souvenez-vous des annélides dont je parlais dans la première partie et dans cet article sur les organismes obscènes (Vous pouvez aussi vous référer à cet article ici). Ces animaux sont segmentés (plus exactement métamérisés), c'est à dire qu'ils sont constitués d'unités morphologiques distinctes mais similaires mises à la suite les unes des autres. Imaginez en fait une chaîne. D'autres organismes sont du même genre : les arthropodes comprenant les insectes, arachnides et les « crustacés » (qui comprennent tout ce que vous appelez crustacés mais qui n'existent pas plus que les poissons puisqu’ils devraient comprendre les insectes !). On peut les imaginer aussi comme une chaîne ou un ensemble d'anneaux similaires. Bref ce joyeux groupe des arthropodes est organisé selon la même structure que les annélides. Quoi de plus normal que de les regrouper dans un groupe appelé "Articulata". Petit bémol, les mollusques ont un développement très proche de celui des annélides. Rhoo on va dire que ce n'est pas trop grave. Mais l'analyse de l'ADN sépara nos deux conjoints. L'ADN seulement ? Une analyse morphologique en 1992 le fit aussi plusieurs années avant l’étude de l'ADN et réfutant l'hypothèse "Articulata" montrant ainsi que la métamérie était apparue indépendamment dans ces deux groupes, que c’est une convergence. Mais cette étude ne fut pas beaucoup reprise, les auteurs n'ayant probablement pas réalisé l'impact de leur découverte. Régulièrement grâce à l'ADN, on remarqua alors deux grand groupes : les Ecdysozoa regroupant les animaux qui muent dont les arthropodes comme les insectes ou d'autres étranges vers comme les nématodes ou les priapuliens. Un autre groupe fut mis en évidence, celui des lophotrochozoaires, dont on ne trouve au final pas vraiment de bon caractère morphologique pour les décrire dans leur ensemble. Les lophotrochozoaires sont un groupe comprenant des animaux tous plus étranges les un que les autres : annélides déjà, mollusques, platheminthes mais aussi rotifères, gnatostomulides, gastrotriches, phoronidiens et autres étranges joyeusetés animales. Si la classification au sein des ecdysozoaires, bien qu'encore en discussion, ne semble pas être trop bordélique, ce n'est pas le cas chez les lophotrochozoaires où les relations de parentés sont aussi confuses que la prononciation de ce mot et de nombreuses découvertes restent encore à faire.

L’arbre des animaux très simplifié (et encore en discussions hein). Annélides et arthropodes sont entourés en rouge. Remarquez qu’ils sont éloignés. Et oui, à force d’être trop attachés à un moment il faut prendre ces distances ! (Source de l’image : arbre des animaux un peu beaucoup simplifié)
Voici un long article pour une longue épopée. La phylogénie des animaux est une tâche complexe et longue. Au final il nous reste une possibilité passionnante : la discussion. C'est un domaine où toutes les surprises sont permises, on se trompe, on se corrige, on réinterprète pour finalement se rendre compte que la première hypothèse était la bonne... Enfin, à moitié ! L'analyse de la morphologie et de l'ADN s'opposent souvent, se retrouvent parfois, coïncident même d'un bout à l'autre dans certains cas. Les choses ne sont donc pas finies. Loin de là ! Ces quelques dernières dizaines d'années ont été décrits trois groupes d'animaux tout à fait différents de tout ce qu'on connaissait auparavant.  On ne parle pas d'espèces au sein d'un groupe bien connu mais de groupe inconnu ! Comme quoi il reste encore des aliens à découvrir sur notre propre planète. A moins que l'on ne montre que ces aliens appartiennent à un groupe que l'on connaît bien ? Mais ne nous avançons pas, il est sûr que d'imprévisibles découvertes nous attendent.

Pour aller plus loin : 
Tous les ouvrages de zoologie générale devraient faire l'affaire ! :
Classification phylogénétique du vivant de Guillaume Lecointre et Hervé le Guyader, 2006, éditions Belin.
Invertebrates, second edition de Richard C. Brusca et Gary J. Brusca , 2003, éditions Sinauer.
Les invertébrés marins méconnus de Jean Loup d'Hondt, 1999, éditions Institut océanographique
Précis de siences biologiques, zoologie, I Invertébrés de P. P. Grassé, R. Poisson et O. Tuzet, 1961, éditions Masson et Cie.

Quelques articles :
-Bourlat S. J., Nielsen C., Lockyer A. E., LittlewoodD. T. J. et Telford M. 2003. Xenoturbella is a deuterostome that eats molluscs. Nature, 424, 925-928.
-Eernisse D.J., Albert J.S. et Anderson F.E. 1992. Annelida and arthropoda are not sister taxa: a phylogenetic analysis of spiralian metazoan morphology. Systematic biology, 41(3), 305-330.
-Mallatt J., Waggoner Craig C. et Yoder M.J. 2010. Nearly complete rRNA genes assembled from across the metazoan animals: Effects of more taxa, a structure-based alignment, and paired-sites evolutionary models on phylogeny reconstruction. Molecular Phylogenetics and Evolution, 55 : 1-17… (Ben ça c’est du nom d’article à rallonge ! )
-Manuel M. 2009. Evolution animale : les péripéties de la phylogénie. Encyclopédie Universalis, 134-149.
-Pleijel F., Dahlgren T.G. et Rouse G.W. 2009. Progress in systematics: from Siboglinidae to Pogonophora and Vestimentifera and back to Siboglinidae. C. R. Biologies, 332, 140-148.


Au final un arbre des animaux bien moins simplifié publié en 2010… Comme quoi ben c’est pas facile de s’y retrouver au milieu de tout ça ! (Source de l’image : Mallat et al. 2010)


samedi 24 septembre 2011

Grand ménage de printemps… ou comment faire du rangement en systématique.


De tout temps, les Hommes ont cherché à organiser le vivant, à le classer, afin de pouvoir mieux l’appréhender et mettre un nom sur les choses qui les entouraient. Dès l’Antiquité, les Hommes avaient établi un « rangement » du vivant. Ainsi, Aristote (- 384 à – 322 avt JC) propose-t-il déjà de classer le vivant selon 5 grands groupes selon la « nature de leur âme ». Il définit donc les Roches, les Végétaux, les Animaux, les Hommes et enfin les Anges ; chaque niveau étant supérieur aux niveaux précédents. Aristote appelle ceci « l’échelle des êtres ».
Parallèlement, au sein des Végétaux, on assiste à la mise en place progressive de grandes catégories dans lesquelles se trouvent différentes plantes :
– les « bonnes herbes » (les plantes médicinales), encore appelées « simples »
– les plantes alimentaires,
– les plantes ornementales,
– les mauvaises herbes (« pestes » des cultures, des jardins…)
– les arbres, pour le bois d'œuvre et de chauffage
Toutes ces catégories sont basées sur leur relation entre les plantes et l’Homme : en clair, chaque catégorie correspond à l’usage que fait l’Homme de ces plantes… et ne correspond pas aux caractères, particularités, que peuvent porter ces plantes pour elles mêmes : c’est un raisonnement anthropocentrique (c'est-à-dire centré sur l’Homme uniquement). Ce détail est important pour la suite, vous verrez pourquoi.
Plus tard, au XVIème siècle, Andréa Cesalpino classe les plantes selon leurs organes de reproduction. Cette méthode de classement est reprise ensuite par d’autres naturalistes célèbres, tels que Joseph Pitton de Tournefort au XVIIème siècle, Carl von Linné au XVIIIème (à qui l’on doit notamment l’utilisation de la nomenclature binomiale… mais ceci est un autre sujet de discussion, ne nous dispersons pas), Antoine Laurent de Jussieu, fin XVIIIème, début XIXème siècle (fondateur des différents noms de familles de plantes encore utilisés aujourd’hui)… Tous ces personnages n’intègrent pas dans leurs travaux la notion d’évolution, car L’Origine des Espèces de Charles Darwin (première édition en 1859) n’est pas encore écrite !!!
Mais ne nous emballons pas. Jussieu crée, en 1789, différentes familles de plantes, dans lesquelles il regroupe les plantes décrites dès 1753 par Linné (dans l’ouvrage Species plantarum). Les plantes présentes dans ces familles s’y trouvent parce qu’elles possèdent une ressemblance globale entre elles. Au jour d’aujourd’hui, on parlerait de critères phénétiques* qui permettent la mise en place de ces regroupements.
Prenons l’exemple des macro-algues du groupe des Charophytes et des plantes aquatiques telles que Ceratophyllum sp. :
(à gauche, une Charophyte, à droite, Ceratophyllum sp., Sources : http://www.aphotoflora.com/lower_plants_stoneworts_characeae.html,
A première vue, ces deux organismes paraissent très proches ; ils vivent tous les deux en milieu aquatique, dans les eaux douces calmes et stagnantes… on pourrait donc penser qu’ils sont proches évolutivement, voire même parents proches ! Eh bien, en s’y intéressant de plus près on remarque qu’ils sont en réalité assez éloignés dans l’arbre du vivant : ils ne possèdent pas le même système de reproduction, ne sont pas organisés anatomiquement de la même manière… et cela va jusqu’au niveau cellulaire ! Car tandis que Ceratophyllum sp. possède des cellules diploïdes** lorsqu’il se trouve dans sa phase de vie la plus longue, les Charophytes possèdent des cellules haploïdes***.
Revenons à nos moutons. Jussieu a donc organisé les plantes dans différentes familles, selon leurs ressemblances globales.
En 1968, un botaniste Nord-Américain, Arthur Cronquist, organise les Végétaux selon un système d’ « arbres à bulles ». Ci-dessous, celui représentant les relations entre les groupes de plantes à fleurs tels que l’envisageait Cronquist :
(un "arbre à bulle" selon la vision de Cronquist, Source : http://botany.csdl.tamu.edu/FLORA/newgate/cron1dic.htm )
Selon lui, les Magnoliidae produisaient les Caryophyllidae et les autres groupes dits supérieurs au cours de l’évolution… Cette vision de l’évolution des plantes n’est pas sans rappeler celle d’Aristote et son « échelle des êtres ».
Ce que Cronquist n’avait pas pris en compte, c’était la parution en 1966 d’un livre de Willi Hennig, qui portait sur une nouvelle méthode de reconstruction des liens de parenté entre les êtres vivants : la méthode cladistique. Cette méthode se base sur l’étude individuelle de chaque caractère présent chez chaque individu, ce qui permet de faire des regroupements d’individus, non plus sur la similitude globale, mais sur le nombre de caractères exclusivement partagés… et dus à une ascendance commune (c'est-à-dire un même ancêtre exclusif). A la différence de Cronquist, Hennig précise que tous les organismes vivants actuels ont le même « niveau », « degré » d’évolution et qu’aucun organisme actuel ne peut descendre d’autres organismes actuels… C’est pour cela que la notion des Magnoliidae engendrant la lignée des Caryophyllidae ou des Rosidae est obsolète : les plantes présentes dans ces trois ensembles sont toutes des plantes actuelles. Il n’est donc plus question ici de « degré d’évolution », « d’ancienneté ». Par ailleurs, le groupe des Magnoliidae tel que l’entendait Cronquist a éclaté en plusieurs sous groupes, répartis au sein des Angiospermes.
D’autres travaux ont été par la suite effectués sur les caractères morphologiques des Végétaux, pour déterminer une classification phylogénétique de ceux-ci (c'est-à-dire une classification se basant sur l’histoire évolutive présumée réelle des grands groupes de Végétaux). Puis, les scientifiques se sont intéressés à une autre source d’information que les caractères morphologiques : les caractères moléculaires. Ces informations sont obtenues suite au séquençage d’une portion du génome des individus, grâce à un grand nombre de techniques de laboratoire que nous ne détaillerons pas ici.
En 1993, donc, une équipe de chercheurs dirigée par Chase a utilisé la séquence du gène RbcL (une portion de l’ADN contenu dans les chloroplastes des cellules des plantes) récoltée chez environ 500 taxons parmi les plantes à fleurs uniquement, de manière à organiser ceux-ci les uns par rapport aux autres, selon leurs relations de parenté présumées.
En 1998, un groupe de chercheurs - dénommé APG I, pour Angiosperm Phylogeny Group - a utilisé trois gènes pour obtenir une phylogénie des Angiospermes, mieux résolue que la précédente.
Quelques années plus tard, en 2010, le même groupe de chercheurs a effectué d’autres analyses plus poussées et a obtenu ceci :
(arbre phylogénétique simplifié des plantes à fleurs, d’après Angiosperm Phylogeny Website)
Comme on peut le voir sur cette figure, on ne retrouve plus les groupes « d’utilité » mis en place par les Anciens de l’Antiquité, pas plus que les groupes de Cronquist tels que celui-ci les avait imaginés. Les chercheurs d’APG se sont aperçus cependant que, contrairement à ce qu’on pensait au départ, il n’y avait pas uniquement deux groupes au sein des Angiospermes (à savoir, les Monocotylédones et les Dicotylédones), mais que les Dicotylédones étaient en fait constituées de plusieurs lignées tandis que les Monocotylédones sont monophylétiques. (elles proviennent toutes d’une même branche de l’arbre contrairement aux Dicotylédones). En revanche, les Magnoliids (au sens où l’entendait Cronquist, en partie) se retrouvent au beau milieu de l’arbre des plantes à fleurs… alors qu’on pensait que leur divergence au sein des Angiospermes avait eu lieu en premier ! Une telle remise en question de la position des groupes les uns par rapport aux autres ne peut s’effectuer que grâce à l’analyse cladistique, pour produire des phylogénies : d’où l’utilité de se baser sur ce type d’analyse plutôt que sur une étude des similitudes globales.
Voilà, j’en ai fini pour aujourd’hui ! A présent que les grandes idées ont été traitées, nous allons pouvoir nous intéresser en détail aux différentes particularités du monde végétal… mais ça, c’est pour plus tard !
* La phénétique est une méthode de regroupement d’individus sur la similitude globale qui existe entre ces individus. Cette méthode ne se base pas sur l’étude caractère par caractère (un caractère est un attribut observable d’un individu) de chaque individu, ce qui peut entrainer des erreurs d’interprétation.
** diploïde : une cellule est diploïde lorsque son noyau contient des paires de chromosomes homologues
*** haploïde : une cellule est haploïde lorsque son noyau ne contient que des chromosomes en un seul exemplaire chacun
Sources :
cours « introduction à la biologie animale » de Marc Girondot, professeur à l’Université Paris Sud 11
cours « classification et phylogénie » d’Hervé Sauquet, maitre de conférence à l’Université Paris Sud 11
Classification phylogénétique du vivant par Guillaume Lecointre et Hervé Le Guyader

mercredi 7 septembre 2011

Les mystères de la phylogénie...

Cet article est une reprise d’un article présent sur mon autre blog : http://nicobola.skyrock.com . Du coup beaucoup de liens dans l’articles réfèrent à mon autre blog.

Il est temps d’expliquer pourquoi ce blog porte ce nom : « les poissons n’existent pas » même si cela sera détaillé plus en détail pour les « poissons » eux même, je vais me permettre de parler d’un sujet assez particulier de la biologie : la phylogénie. Et en phylogénie,  le terme « poisson » n’a simplement aucune signification biologique! "non mais ho! poisson ça a une signification voyons!" Ben non et je vais vous expliquer pourquoi!

En biologie on fait pas de la classification au feeling! Bon ok, on l'a fait pendant un certain temps. Mais Aujourd'hui ce n'est plus le cas. Pour classer des organismes il faut les caractériser. On caractérise un groupe par la présence d'un caractère. Ça parait évident mais vous verrez que c'est subtil. Alors, première question, par quoi caractérise t-on les invertébrés? "Ben par l'absence de vertèbre". Ha mais non! L'absence de vertèbres n'est pas une caractéristique mais une absence de caractéristique! Et je vous ferais remarquer que l'ordinateur (ou le téléphone pour ceux qui sont plus "hight tech") que vous regardez en ce moment même n'a pas de vertèbres! C'est donc un invertébré! Or il y a plus de raison de classer l'abeille avec les mammifères plutôt qu'avec les ordinateurs (ou les I-phone). Comme quoi quand on définit quelque chose par ce qu'il n'a pas on créé des classes très bizarres. "Ha mais oui, répondrez vous, mais un invertébré c'est un animal or les objets informatiques n'en sont pas!". Oui mais au sein des animaux les invertébrés n'ont pas plus de sens: l'ascidie est par exemple plus proche des vertébrés que des éponges. Il n'y a donc pas de raison de les mettre ensemble.

A gauche une éponge. En haut à droite un schéma d'une larve d'ascidie. En bas à droite des têtards. Il n'y a pas de raison de mettre ensemble l'ascidie et l'éponge (cadre rouge) plutôt que le têtard (grenouille) et l'ascidie (cadre bleu = chordés).

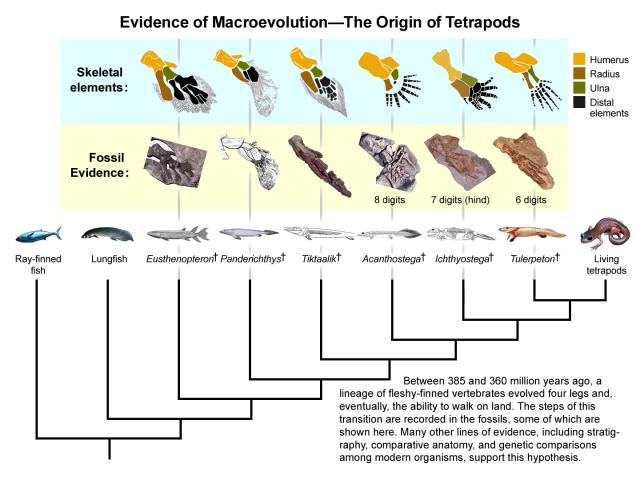
Admettons que vous acceptiez alors ce que je vous raconte, vous me direz alors "ha oui mais les poissons? c'est pas défini négativement! c'est défini par la présence de nageoires!". En fait le raisonnement est exactement le même, même si ça paraît plus subtil. Lorsqu'on observe les nageoires des poissons, on constate que certaines sont plus proches des membres de tétrapodes (vertébrés terrestres) comme la nageoire du cœlacanthe. En fait, les membres des vertébrés terrestres (parlons de pattes) sont des nageoires très modifiées. Et que ce passe-t-il si on parle de nageoires en opposition à la patte? Et bien on construit une classe nageoire à laquelle on exclu la patte parce qu'elle est trop modifiée. Les poissons sont donc des vertébrés auxquels on retire le groupe des vertébrés terrestres parce-que les vertébrés terrestres seraient trop différents (au nom de quoi?). Donc les poissons ne sont pas mieux définit que les invertébrés. La nageoire est donc un état dit primitif (ou plésiomorphe) et la patte est un état dérivé (ou apomorphe). Les poissons sont un groupe paraphylétique car définit sur un caractère primitif : ce sont des vertébrés à nageoires, ce qui équivaut à dire que ce sont des vertébrés sans membres chiridiens. Les tétrapodes (ou vertébrés terrestres) sont définis par un caractère dérivé ils représentent donc un groupe monophylétique, un bon groupe en biologie.

Une illustration comparant le membre des "poissons" et de fossiles proches des tétrapodes au membre des tétrapodes actuels (entourés en rouge). Remarquez que les membres représentés ont à leur base un seul os, l'humérus, ce qui n'est pas le cas de la nageoire de la plupart des autres "poissons" (du coup les guillemets c'est pour dire que "poisson" ça existe pas ! ). Source de l'image ici.

Oui bon, c'est de la classification tout ça, et la biologie là dedans ? Ben c'est facile à remplacer ! La théorie de l'évolution, classiquement formulée, considère que les caractères partagés des organismes sont hérités d'un ancêtre commun. Imaginons que l'espèce humaine perdure et se diversifie (ce dont on peut douter, c'est un exemple purement théorique) peut-on imaginer qu'un jour les descendants des humains ne soient pas des mammifères? Évidement que non! Un organisme, aussi dérivé soit-il doit rester dans son groupe. Mais alors, si ses caractères changent trop? Et bien ce n'est pas une raison de changer l'organisme de classe. En fait les tétrapodes ont toujours des nageoires mais sous la forme de pattes! Un groupe monophylétique c'est donc un groupe définit sur un caractère dérivé propre : un caractère hérité d'un ancêtre commun! Et donc le mystère de cette classification c'est l'évolution! (Qui n'est plus vraiment un mystère, même s'il y a encore du boulot là dedans).

Il y a un autre problème encore, le problème des caractères qui se perdent ou réversions. Par exemple les serpents n'ont plus de pattes. Et bien? On l'a dit, ils ne peuvent pas sortir de leur groupe, ça reste des tétrapodes. Oui mais, à partir de quoi peut-on le dire? Et bien les serpents ont des caractéristiques d'amniotes, de diapsides, de squamates (lézards), or tous ces groupes sont inclus dans les tétrapodes ! Les serpents sont donc des tétrapodes quand même. Comprenez bien qu'en fait pour faire une classification il faut comparer les caractères : c'est la méthode cladistique. Rajoutons pour interpréter ça qu'on peut toujours considérer, évolutivement, que les serpents ont toujours des pattes. Mais tellement petites (et donc dérivées) qu'on ne les voit plus. D'ailleurs certains serpents ont des vestiges de pattes et on a des fossiles de serpents à pattes, ce dont on s'attendait fortement à trouver.

Représentation d'un serpent fossile à pattes : Pachyrhachis problematicus. Les pattes sont en arrière-plan. Comme quoi les serpents sont bien des tétrapodes, mais même si sans ce fossile on le savait.

Ha et encore un souci: certains caractères apparaissent plusieurs fois dans l'évolution comme par exemple le panache des phoronidiens et des sabelles ou l'aile des oiseaux et des chauves souris. On peut regarder ces deux types d'ailes et montrer qu'elles sont très différentes : l'une est recouverte de plumes, l'autre d'une membrane de peau. L’une est soutenue par l'ensemble de la patte (oiseaux), l'autre par la main (chauves souris). Mais parfois même à l'œil on ne fait pas la différence. Et bien comme avec les serpents, c'est en comparant avec les autres caractères qu'on va pouvoir décider! Ces caractères qui apparaissent plusieurs fois indépendamment dans l'évolution sont appelés convergences. L'ancêtre des chauves-souris et des oiseaux n'avait pas d'ailes. On ne doit donc pas les regrouper dans une même classe. Faire ça revient à faire un groupe polyphylétique.


Comparaison du panache d'un phoronidien à droite et du panache d'une sabelle à gauche. Pourtant ces deux panaches bien que ressemblant sont organisés de manière très différente.

Au final, en respectant tout ça on a fait une classification phylogénétique, c'est à dire une classification évolutive. Mais attention, ce n'est pas une généalogie ! On cherche bien "qui est plus proche de qui" et surtout pas "qui descend de qui" (au grand jamais pauvres fous!), même avec les fossiles! Une classification phylogénétique est donc basée sur des groupes monophylétiques seulement, c'est à dire des groupes soutenus par au moins une synapomorphie (ou caractère dérivé ou caractère partagé propre) : des groupes comprenant un ancêtre et tous ses descendants. Les groupes paraphylétiques comme les poissons ? A la poubelle ! Et c'est sans appel ! Les groupes polyphylétiques ? Pareil, tout ce qu'on veut ce sont des groupes MONOPHYLETIQUES!

Ha évidement on peut aussi utiliser l'ADN pour faire des classifications, mais tout ça reste bien moins accessible à l'intuition mais voici une conférence intéressante tenue au collège de France qui parle méthodes probabilistes et aussi un peu de cladistique : Nicolas Galtier : Molécules et morphologie n°1 : Les méthodes probabilistes en phylogénie moléculaire : fondements, usages et controverses.
Au passage je ne suis pas tout à fait d’accord avec la conclusion, pour ceux qui ont suivi jusqu'au bout et bien compris: faire de la phylogénie n'est pas forcément faire de la cladistique...

Voici quelques liens si vous voulez aller plus loin :

Article wikipédia sur la cladistique pour ceux qui ont pas peur des mots barbares: Cladistique.

Artcicle wikipédia sur la phylogénie: Phylogénie.

Article de M.Collin très bien expliqué : La classification phylogénétique en résumé.

Une excellent article de Taupo sur le blog strange stuff and funky things : Podcast Science : L'arbre du vivant 2/3. 

Un article que j'ai écrit sur le blog de Darwinapolis : Termes Abusifs en Evolution !

Vidéos sur le site du cnrs, certaines de ces vidéos reprennent des concepts que j'ai expliqués: EVOLUTION, DES CLES POUR COMPRENDRE.

Related Posts Plugin for WordPress, Blogger...