jeudi 16 février 2012

A table !!! Ou quand parfois, ce sont les plantes qui mangent les animaux...

Petite introduction

Aujourd'hui nous allons parler des... plantes carnivores. Ahaha ! me diras tu, cher lecteur, chère lectrice, enfin des plantes qui bougent, qui chassent, qui dévorent des animaux ! Des plantes qui font autre chose que rester sans rien faire à se dorer la pilule au soleil toute la journée pour photo-synthétiser...
Que nenni, Petit Scarabée !

Tout d'abord, il faut se sortir de la tête toutes ces élucubrations et autres histoires à dormir debout à propos des plantes carnivores. Non, une plante carnivore ne peut pas manger un être humain... et encore moins un mammouth !
Ceci est un mammouth. Dans une plante carnivore. Si si...
d'après le film : Ice Age : Dawn of the Dinosaurs

Bien longtemps pourtant, on a considéré les plantes carnivores comme de véritables dévoreuses de chair animale. Pour preuve, le récit d’un certain Carl Liche, publié en 1881 et reprit à l’époque par de nombreux journaux. Cet explorateur relate une de ses aventures : à Madagascar, guidé par la tribu des Mkodo, il se retrouve nez à nez avec un arbre anthropophage. James W. Buel publie en 1887 Sea and Land dans lequel il rapporte le témoignage de nombreux voyageurs « de confiance » ayant aperçu une plante carnivore de grande taille en Afrique Centrale et en Amérique du Sud (deux zones de forêts denses), la Ya-te-veo (traduit littéralement par « Je te vois ») qui « ne se contente pas seulement des myriades d’insectes de grandes tailles qu’elle attrape et consomme, mais sa voracité atteint le point de faire des humains ses proies ». En 1927, Chase Osborn reprend le récit de Liche dans son livre "Madagascar, Terre de l'arbre anthropophage". Ce n’est qu’en 1955 que la supercherie du récit de Carl Liche est révélée (ainsi d'ailleurs  que l'existence factice de Carl Liche)(Chase et al., 2009).

La plante "Ya-te-veo", illustration de J.W. Buel, 1887
Source : wikipedia.org 
On pourrait se dire qu'avec le temps, toutes ces histoires auraient pu être considérées comme de simples fables et oubliées... Néanmoins, le mythe de la plante carnivore et/ou anthropophage reste vivace dans la culture occidentale, que ce soit dans les livres (Le Seigneur des Anneaux, Harry Potter...)les bandes dessinées (Batman, Hulk, Tarzan), les films (La petite boutique des horreurs en 1960, Jumanji en 1995, Les Ruines en 2008...) ou les jeux vidéos (Super Mario, Pokemon).

Quelques exemples des plantes carnivores imaginaires obtenues par certains auteurs après avoir consommé des substances pas très légales... tu reconnaîtras, chère lectrice, chère lecteur, un Pokémon, un personnage de la série Batman, et des petits sorciers bien connus... ou bien encore des fonds d'écran à ne plus savoir qu'en faire !

Mais revenons à nos moutons. Enfin, à nos plantes carnivores réelles... car, oui, toutes ces histoires de plantes mangeuses d'hommes ont bien un fond de vérité : il existe des plantes qui sont capables de consommer de la matière animale pour assurer leur croissance.
Dès 1860, Charles Darwin (et oui, encore lui !) étudie les plantes du genre Dionaea, Drosera et Utricularia et publie ses résultats dans l'ouvrage Insectivorous plants en 1875... Même si, à l'époque, ses conclusions ne font pas l'unanimité car elles vont à l'encontre de certaines croyances religieuses (voyons, les plantes ne mangent pas les animaux, tout le monde sait ça, c'est contre nature !), cet ouvrage est l'un des premiers consacré exclusivement à ces plantes si particulières. 

Mais au fait, c'est quoi une plante carnivore exactement ?

La définition d'une plante carnivore semble évidente, me diras-tu cher lecteur/chère lectrice. C'est une plante qui mange des animaux ! Ha mais oui bien sûûûûûûr. Où avais-je la tête ? Pas sur les épaules en tout cas...
Oui, parce vous me la trouverez, la bouche de la plante...
Alors, comment caractérise-t-on une plante carnivore ?

Thomas J. Givnish propose la définition suivante : une plante est dite carnivore si, et seulement si, elle possède un ensemble de caractères et de processus physiologiques qui lui permette d’attirer, de piéger et/ou de digérer des proies, mais également de récupérer les éléments nutritifs de ces proies, le tout ayant un effet sur sa capacité photosynthétique (Givnish et al., 1984; Juniper et al., 1989).
Quand on imagine une plante carnivore, on pense en premier lieu aux plantes typiques présentes dans les genres Nepenthes, Drosera ou même Dionae.
Il faut savoir que ces plantes, bien qu'elles possèdent des morphologies différentes, fonctionnent de la même manière : elles attirent, piègent et digèrent les insectes qui s'approchent un peu trop près...

La digestion des insectes est effectuée grâce à des enzymes protéolytiques (c'est à dire, qui lysent, fractionnent les protéines en plus petits éléments assimilables par la plante à travers ses parois cellulaires).
C'est cette caractéristique - la digestion - qui engendre pas mal de polémiques autour d'une définition claire et précise de la carnivorie végétale.
Ainsi, toutes les plantes considérées actuellement comme carnivores ne répondent pas entièrement à cette définition. En effet, certains auteurs introduisent la notion de "précarnivorie" et de "protocarnivorie".
Pour Juniper et al. (1989), une plante qui attire, qui capture et qui assimile les éléments nutritifs de sa proie, mais qui ne sécrète pas d’enzymes digestives (et dont la digestion repose donc sur une décomposition réalisée par des commensaux ou des bactéries) tombe sous un statut de « précarnivorie ». Non seulement elle n’est pas carnivore, mais l’appellation « précarnivore » sous entend une idée gradiste de l’évolution, c'est-à-dire un concept selon lequel certains organismes actuels sont « plus évolués » que d’autres organismes (actuels eux aussi) et que ces organismes « plus évolués » descendent des organismes « moins évolués ».
Pour Givnish et al. (1989), la protocarnivorie se définit par la possession de caractères permettant l’attraction, la capture ou la digestion d’une proie, mais dont ce n’est pas la fonction primaire et dont l’allocation d’énergie n’est pas dévouée à la carnivorie. Prenons l'exemple des plantes incluses dans le genre Nicotiana (c'est le genre où se situe N. tabacum, plus connu sous le nom de... tabac) : certaines d'entre elles sécrètent des mucilages (= une sorte de glu, de colle...) pour empêcher que les insectes phytophages ne les attaquent et ne les consomment. Elles tuent les insectes par le même procédé que les plantes du genre Drosera mais elles ne les consomment pas !

Je ne vais pas détailler les différents types de pièges qui existent, tu pourras très facilement, chère lecteur, chère lectrice, observer toutes les formes par toi même si tu te rends au magasin de jardinage le plus proche de chez toi, section "plantes d'intérieur", rayon "plantes tropicales", étagère "plantes carnivores", - 30% de réduction sur les pots marqués d'une pastille bleue oups désolé je m'égare un peu là où en étais-je...
Ah ? On me dit en régie que je dois quand même détailler les différentes plantes carnivores qui existent et les mécanismes qui leur permettent de consommer des insectes. Eh bien soit ! en avant la musique !
On distingue différents types de pièges permettant aux plantes carnivores de récupérer les Insectes en guise de casse-croûte… je vais vous en présenter quelques uns.

1) Les pièges passifs ou semi-actifs
Il s’agit des pièges qui ne nécessitent pas de mouvements de la part de la plante pour capturer l’insecte : ce dernier va au devant de sa propre mort de son plein gré… si l’on peut dire !

1.1) Piège à mucilage… ou piège « papier tue-mouche »
Les plantes qui possèdent ce type de piège attrapent leurs proies de la même manière que tous les humains qui en ont assez de voir tourner les mouches au plafond de leur cuisine : une simple bande de papier collant suffit à immobiliser les insectes bruyants pour les humains… mais les plantes, quant à elles, vont sécréter des enzymes digestives qui vont dégrader les protéines des insectes collés aux feuilles. Ensuite, les éléments issus de cette dégradation vont être absorbés par la plantes.
Ce type de piège se retrouve chez les genres Byblis, Drosera, Drosophyllum, Pinguicula, Roridula et Triphyophyllum. En réalité, il ne s’agit pas d’un véritable « papier tue-mouche » mais plutôt d’un tapis de petits poils glandulaires – appelés les trichomes – qui sécrètent des mucilages – liquide gluant – et des enzymes digestives (d’après Albert et al. 1992). Chez ces espèces, l’insecte piégé est lentement digéré sur place.
Une feuille de Drosera avec un insecte englué ; la feuille se replie progressivement sur la proie
Source : http://fr.wikipedia.org/wiki/Fichier:Drosera_capensis_bend.JPG 

Dans le cas des pièges semi-actifs des plantes du genre Drosera, on observe que quelques instants après la capture de l’insecte, les trichomes se replient et se collent à lui. L’insecte est alors définitivement piégé et pour faciliter le contact de celui-ci avec les glandes productrices d’enzymes, la feuille entière peut se replier sur la proie en quelques heures.

1.2) Pièges à urnes… ou comment finir sa vie noyé !
Urne de Nepenthes. Ce qui est important à retenir, c'est qu'il existe 3 grandes zones :
zone supérieure, constituée du péristome, des lèvres et du "chapeau", qui servent à l'attraction de l'insecte
zone médiane, correspondant à la zone glissante (où l'insecte va vraiment être pris au piège) et qui va l’empêcher de remonter et de sortir
zone inférieure, où l'insecte va être finalement digéré lentement et absorbé.


Cette stratégie est celle de plusieurs genres tels que Cephalotus, Darlingtonia, Heliamphora, Nephentes et Sarracenia. Ces pièges ont tous en commun le fait d’être des feuilles dont la partie supérieure se retrouve être l’intérieur de l’urne (Juniper et al., 1989). Les pièges de ces différents genres sont constitués de 3 zones principales correspondant chacune à une fonction bien précise.

Il existe d’autres pièges passifs chez d’autres genres, qui ne sont ni des « papiers tue-mouche » ni des urnes, mais je n’en parlerai pas ici. Sinon, cet article va finir par être trop long et personne ne pourra le lire jusqu’au bout sans mourir d’ennui ! 

2) Les pièges actifs
Attention ici, on retrouve LA plante carnivore emblématique, à savoir… la Dionae. Mais aussi un autre genre de plante mal connu…

2.1) Les pièges à mâchoires… gare aux morsures !
Les marges des lobes des feuilles de Dionaea sont parsemées de glandes qui sécrètent des glucides – c'est-à-dire des sucres simples. De plus cette zone absorbe les UV, la rendant attractive au regard des insectes. Quand une proie s’approche et excite des poils sensibles sur le piège, un courant ionique calcique se déclenche et a pour effet de changer l’acidité dans les cellules de la nervure centrale. Ce changement provoque une fermeture du piège par différence de pression hydrostatique. Ce mouvement est très rapide, de l’ordre du 1/30ème de seconde (Barthlott et al., 2008). Bon… peut être que là je vais clarifier les choses, c’est un peu abscond quand on ne connaît pas grand-chose à la biologie cellulaire. En gros, imaginez la chose : l’insecte se pose au centre de la feuille en mâchoire. A ce moment là, elle titille les poils sensibles présents dans le piège… ce qui a pour conséquence un changement de la quantité d’eau dans les cellules (et vous savez très certainement, chère lectrice, cher lecteur, que les cellules végétales contiennent un gros réservoir d’eau – entre autre – appelé vacuole) : cela permet au piège de se refermer brutalement. Un peu comme quand on appuie sur un ballon de baudruche fermé presque dégonflé : si on appuie fort, la matière plastique va redevenir tendue par l’air à l’intérieur. Eh bien, lorsqu’on parle de changement de pression hydrostatique, c’est un peu comme si les cellules étaient un ballon de baudruche dégonflé qui redevient gonflé instantanément…

Cela se passe de commentaire... en tout cas, l'insecte va y passer, ça c'est sûr !
Sources : http://www.dionaea-muscipula.com/culture.html

Au final, la proie continuant à se débattre à l’intérieur du piège provoque sa fermeture complète et hermétique en quelques heures. Ensuite la plante sécrète un ensemble d’enzymes (estérases, phosphatases, protéases) qui auront pour effet de dégrader la proie. Quelques semaines plus tard, le piège se rouvre sur la carapace vide de l’insecte et redevient fonctionnel (Juniper et al., 1989).

2.2) Les pièges à outres… totalement siphonnés !
On ne trouve ce type de pièges que chez les Utricularia, qui sont des plantes aquatiques d’eau douce. Elles possèdent des utricules (c'est-à-dire des outres) de taille variable, entre 0,2 et 1,2 cm de diamètre (Chase et al., 2009). Cette structure est refermée par un clapet qui porte des poils sensitifs. La pression à l’intérieur d’une outre au repos est plus faible par rapport à celle du milieu extérieur (Adamec, 2011). Dès qu’un animal touche un des poils sensitifs, le clapet s’ouvre brusquement (1/50ème de seconde, Barthlott et al., 2008) et il est aspiré dans l’outre avant que le clapet ne se referme. Des enzymes sont alors sécrétées à l’intérieur de l’outre afin de digérer la proie qui s’y trouve ; la plante peut ensuite récupérer les produits de la digestion (Chase et al., 2009).


Voici une petite outre d'Utricularia
Pour plus d'informations sur les différents pièges existants chez les plantes carnivores, cliquer ici .

Les plantes carnivores parmi les autres plantes à fleurs : pas si simple de s'y retrouver...

Bref. Passons à présent à la question qui m’intéresse plus personnellement et qui s'éloigne bien évidement de la sempiternelle ritournelle "la plante carnivore de ma petite sœur perd ses feuilles, faut-il que je l'arrose plus ?" ou encore "c'est quoi comme espèce ma plante ? c'est une rare ?" ; la question que vais développer ci-après est donc la suivante : où se situent les plantes carnivores dans l'arbre des plantes à fleurs ?
Attention, ici, lorsque je parle "d'arbre des plantes à fleurs", je fais bien entendu référence à la classification phylogénétique des plantes à fleurs - appelées aussi Angiospermes - dont j'ai déjà parlé dans la dernière partie d'un article précédent ici . Pour celles et ceux qui n'auraient pas lu cet article ou qui auraient tout simplement la flemme, je dirais seulement que "l'arbre des plantes à fleurs" est la manière actuelle de classer les Angiospermes, selon leurs relations de parenté.

Or donc, nous voici face à un problème concret : en bon scientifique que nous sommes - et particulièrement en tant que scientifique bien au fait des notions reliées à l'évolution en général - nous voulons savoir si le syndrome carnivore (autre nom de la carnivorie) est apparu une seule fois dans l'arbre des Angiospermes... c'est à dire si toutes les plantes carnivores actuelles sont directement reliées entre elles, phylogénétiquement parlant. 
Pour Darwin, en 1875, toutes les plantes carnivores connues se répartissent dans trois grands groupes, disséminés parmi les autres groupes d'Angiospermes : les Droseraceae, les Lentibulariaceae, les Nepenthaceae. Par conséquent, Darwin considère que la carnivorie associée à ces groupes est également apparue trois fois de manière indépendante. Je parlerai plus en détail de cette notion d'apparition indépendante plus loin dans cet article.
Par contre, Léon Croizat, en 1960, considère que la carnivorie chez les plantes correspond à une divergence « à la base » du groupe des Angiospermes ; il pense que la carnivorie est aussi ancienne (si ce n’est plus) que le groupe des Angiospermes lui-même. En clair, cela signifie que pour Croizat, les plantes carnivores sont apparues antérieurement à toutes les autres plantes à fleur au cours des temps géologiques. Dans un article précédent, Nicobola a déjà parlé des travaux de Croizat ici .

Or, d'après les dernières études sur les plantes carnivores, il semble que ce soit la solution de Darwin qui soit la bonne... Voyez plutôt :

Phylogénie des Angiospermes avec mise en évidence des différentes lignées indépendantes de plantes carnivores (d'après Ellison & Gotelli, 2009).
Bon, d'accord... on ne voit pas très bien, c'est écrit très petit. Mais ce qui est important à voir ici, ce ne sont pas forcément les noms des plantes... mais les couleurs. Ainsi, en vert, on retrouve les groupes qui contiennent un ensemble de plantes strictement carnivores. En jaune, ce sont les groupes où seules quelques espèces de plantes sont carnivores, et enfin en bleu, il s'agit d'un groupe où la carnivorie d'une espèce est encore discutée.
Comme tu peux l'observer sur la figure précédente, cher lecteur, chère lectrice, toutes les plantes carnivores ne sont pas regroupées au sein de l'arbre des plantes à fleurs : elles sont disséminées parmi les autres groupes de plantes non carnivores. 
Mais alors, comment cela est il possible d'avoir la même chose... différemment en plusieurs fois dans l'arbre du vivant... et au final, s'agit-il bien de choses identiques ou de choses qui semblent seulement identiques mais qui ne le sont pas ? C'est à dire, dans notre cas, est ce que les différentes plantes carnivores ont toutes les mêmes caractéristiques morphologiques, même si elles ne sont pas directement liées phylogénétiquement, ou bien est ce que ce sont des caractères morphologiques qui se ressemblent fortement mais qui ne font que "s'imiter" les uns les autres ?

Toutes ces questions - un peu tarabiscotées, certes - peuvent trouver une réponse simple et claire : la carnivorie est un phénomène de convergence chez les plantes à fleurs.
La convergence est, d'après Darlu et Tassy (1993), "l'apparition indépendante chez deux espèces (ou plus) d'un même caractère." Dans notre cas, il s'agit de la carnivorie végétale... Ce mécanisme de nutrition des plantes grâce à l'utilisation de matière organique azotée provenant des insectes est semblable chez différents groupes de plantes non apparenté directement... ce qui est bien la définition de la convergence. 

Le mécanisme de convergence est fréquemment retrouvé au cours de l'évolution : il peut être le résultat de l'adaptation morphologique de deux espèces éloignées phylogénétiquement au même milieu de vie. C'est ce qui se passe chez les plantes carnivores - la carnivorie permet la survie dans des milieux très pauvres en matières azotées nécessaires à la croissance des plantes - mais je pourrais prendre un tout autre exemple... disons, celui du Thon et du Dauphin : ils vivent dans un même milieu (le milieu marin) et subissent donc des contraintes physiques identiques ;  chez ces deux espèces, on trouve un corps effilé, profilé pour la vitesse et offrant peu de résistance à l'eau. Attention, il ne faut pas tomber dans le piège du finalisme quand on raisonne de cette manière : ce n'est pas parce que le Thon ou le Dauphin "veulent" aller plus vite que leur forme change, non, bien au contraire... mais ce sont les individus possédant les formes les plus effilées qui ont pu engendrer une descendance plus importante, ce qui a entraîné la sélection en faveur des individus les plus aptes à se mouvoir en milieu aquatique... et puisque ce milieu offre les mêmes contraintes physiques pour des groupes d'organismes différents, il est logique de penser qu'une forme générale - effilée et hydrodynamique - sera retenue au cours de l'évolution. D'où l'observation actuelle de convergences.

Si j'ai parlé ici des plantes carnivores, c'est donc pour démontrer une chose : il ne faut pas se fier aux apparences lorsqu'on étudie les sciences de l'évolution, car les éléments que l'on observe à priori n'ont pas forcément de relation phylogénétique proche entre eux ! 
Voilà, j'espère que tu auras compris et apprécié cet article, chère lectrice, chère lecteur... et que tu n'hésiteras pas à poser des questions si question il y a !!!

Je tiens à remercier tout particulièrement Simon Verlynde, qui m'a aidé dans la rédaction de cet article. Merci Simon ! 

Bibliographie 

Adamec L., 2011, Functional characteristics of traps of aquatic carnivorous Utricularia species. Aquatic Botany. Vol. 95, n°3, p. 226–233.

Albert V.A., Williams S.E., Chase M.W., 1992, Carnivorous Plants : Phylogeny and Structural Evolution. Science, New Series, Vol. 257, n°5076, p. 1491-1495.

Barthlott W., Porembski S., Seine R., Theisen I., 2008, Plantes carnivores – biologie et culture. Editions Belin, Paris

Chase M.W., Christenhusz M.J.M., Sanders D., Fay M.F., 2009, Murderous plants: Victorian Gothic, Darwin and modern insights into vegetable carnivory . Botanical Journal of the Linnean Society. Vol. 161, n°4, p. 329–356.

Croizat L. 1960. Principia botanica, or beginnings of botany (with sketches by the author). Caracas, Venezuela.

Darlu P. & Tassy P., 1993, La reconstruction phylogénétique - conseils et méthodes. Masson

Darwin C., 1875, Insectivorous Plants. John Murray, London

Ellison A.M. and Gotelli N.J., 2009, Energetics and the evolution of carnivorous plants – Darwin’s ‘most wonderful plants in the world’. Journal of Experimental Botany. Vol. 60, n°1, p 19–42.

Givnish T.J., Burkhardt E.L., Happel R.E., Weintraub J.D., 1984, Carnivory in the Bromeliad Brocchinia reducta, with a Cost/Benefit Model for the General Restriction of Carnivorous Plants to Sunny, Moist, Nutrient-Poor Habitats. The American Naturalist. Vol. 124, n°4, p 479-497

Juniper B.E., Robins R.J, Joel D.M., 1989, The carnivorous plants. Academic Press, London.


dimanche 8 janvier 2012

Pris pour des pigeons? Telle est la question!

Si je vous dis que je vais vous raconter une histoire de pigeons, avec Darwin comme héros, la sélection comme énigme et la couleur comme indice...
Vous ne comprenez rien à ce que je veux dire? Alors lisez ce qui suit.


Un jour Darwin nous a parlé de pigeons…

Quand le célébrissime Charles Darwin nous a parlé de pigeons dans son oeuvre “On the origin of species”, c’était pour nous expliquer les nuances qu’il faut comprendre entre les notions de race et d’espèce. Il s’est intéressé au pigeon car cet animal a subi une sélection artificielle de longue date et son histoire est donc assez bien connue au travers de nombreux traités et écrits dans toutes les langues. Les pigeons étant des animaux domestiqués à la perfection, il mit en place son propre élevage avec le plus grands nombres de types de pigeon qu’il a pu rassembler à travers le monde (il n’a jamais confié le nombre exact dans son fameux ouvrage!). En guise de support empirique à ses hypothèses, il effectua une multitude des croisements. La question centrale qu’il se posait? Est-ce que toutes les variétés de pigeons qu’il avait pu réunir constituaient-elles des races différentes d’une même espèce ou alors étaient-elles issus de plusieurs espèces?
Ses observations ont fait état d’un nombre assez important de caractères profondément différents entre les variétés de pigeon: taille et forme du bec, largeur de la caroncule (petite excroissance charnue qui recouvre la base du bec), longueur du tarse, largeur de certains os, taille des plumes, présence de plumes aux pattes (oui oui, y’a des pigeons qui ont des plumes vraiment partout), etc.
La caroncule sur le bec du pigeon


Quand notre grand Charles a fait la liste de tous ces caractères, il a cru bon penser que des espèces différentes étaient à l’origine des spécimens qu’il avait devant les yeux. Qui n’aurait pas fait la même chose!


Quelques exemples en photos:
[Source]
[Source]
[Source]
[Source]

[Source]

Mais il n’en était pas à ses premières réflexions sur le sujet et la question le titillait. Il choisit un caractère d’étude particulier, la couleur, et il décida d’entreprendre des croisements afin d’affiner la réponse à sa question.
Et finalement... Vous voulez savoir à quelle conclusion il en est arrivé? Un peu de patience, vous le saurez bientôt… Enfin si vous lisez cet article jusqu’au bout!
Une sélection? Oui mais par les Hommes!
Les pigeons sauvages ont été depuis des millénaires domestiqués pour tout un tas de raison, économiques, sociales, culturelles, et culinaires!!!!
Une des fonctions du pigeon est celle du messager. On a tous entendu parler des fameux pigeons voyageurs. Et bien, certaines variétés de pigeons ont été spécifiquement élevés dans cette optique et ont été beaucoup utilisés et efficaces en temps de guerre.

Vaillant, pigeon de combat, c’est un dessin animé, mais faut pas négliger le rôle des piafs pendant la guerre quand même ! (http://www.toutlecine.com/images/film/0010/00106272-vaillant-pigeon-de-combat.html)


Pline indiquait que les romains payaient les pigeons un prix considérable selon leur généalogie et leur provenance pour s’en servir ensuite comme monnaie d’échange.
Le pigeon faisait aussi office de cadeau entre les pays, comme l’Iran ou le Touran qui faisaient parvenir des oiseaux très rares à l’Inde il y a quelques siècles.
Du temps de la 4ème dynastie égyptienne, il y a plus de 3000 ans avant notre ère, le pigeon était déjà inscrit au menu. Et malgré sa disparition de nos tables pendant quelques années à cause de l’image de saleté et vecteur de maladie qu’on lui collait (je vous rassure il n’y a aucun risque à manger du pigeon d’élevage), la culture culinaire du pigeon ne s’est pas perdue depuis les temps anciens puisque de nos jours encore, il constitue un met couramment dégusté.


De nos jours, en France, le pigeon est élevé d’une part pour des raisons culinaires, mais aussi pour de la compétition. En effet, des concours de pigeons voyageurs sont fréquemment organisés. Ces pigeons, bagués, subissent des entrainements de longues haleines comme vous pouvez vous en douter. Ce sont des sportifs avant tout !
Ainsi quelque soit la raison qui a poussé les hommes à mettre en place des élevages, ils ont, dans un objectif de rendement, d’amélioration de la qualité, ou encore de choix de caractères particuliers, exercé une sélection forte sur les populations de pigeons depuis des millénaires et dans nombreux pays du monde. Et selon le but de la sélection, des caractères différents pouvaient être sélectionnés artificiellement sur plusieurs générations, jusqu’à obtenir des individus proches de la perfection (la perfection est toute relative!).

Les couleurs ne se discutent pas…
Comme Darwin s’est intéressé au critère de la couleur, je vous propose de passer en revue les pigeons qu’on peut croiser de nos jours à Paris et d’en noter les couleurs…


Comme vous pouvez le voir sur ces photos, il y a des pigeons de couleurs très différentes… et encore ces photos ne sont pas réellement représentatives de la diversité de ce qu’on peut voir au détour d’une rue. Sur la place de la Contre Escarpe par exemple, devant Notre-Dame, ou encore, sur les toits de l’université de Jussieu !
Au milieu de toute cette diversité de motifs, on arrive à établir un classement approximatif mais qui sert néanmoins de base aux scientifiques qui étudient les pigeons.
Tout d’abord, il y a les pigeons tout blancs! Ceux là ne sont pas si fréquents que ça à Paris mais il est possible d’en observer si on fait bien attention. Les pigeons blancs sont assimilés aux colombes, symbole universel de paix. Il parait qu’il y a une région en Amérique du Sud, au Pérou il me semble, où la plupart des pigeons sont blancs. Et Nicobola m’a confié qu’ils sont aussi assez fréquents à Göteborg, en Suède. L’exact inverse de Paris et de Londres !
Après les pigeons blancs, il y a les pigeons gris clairs, qui ont deux barres noires/bleues à l’extrémité des ailes. Vous n’avez pas l’impression que ces pigeons là sont les plus fréquemment observes (ne serait-ce que sur les photos ci-dessus)? Encore un peu de patience et vous comprendrez pourquoi…
Ensuite, on trouve des pigeons gris tachetés avec du noir. Mais on voit aussi des pigeons noirs tachetés avec du gris. Quelle différence me direz-vous? Et bien la proportion de chaque couleur voyons! Les seconds donnent l’impression d’être plus foncés de ce fait. Dans les deux cas, les tâches forment un peu comme un damier sur la robe du pigeon.
Enfin, on a les pigeons …. Noirs ! Tout noir, de la tête à la pointe de la queue ! Ceux là sont facilement reconnaissables.

Un beau dégradé du blanc au noir...

Malgré les catégories que je viens de vous citer, il ne faut pas avoir l’esprit trop fermé, car la Nature est très originale et alors on trouve tous les intermédiaires possibles. Parfois même, un pigeon tout noir aura une ou deux plumes blanches sur chaque aile ou encore un pigeon tout blanc pourra avoir la tête toute noire !
Et un autre détail qu’il ne faut pas oublier…. Les nuances que je vous ai cité existent aussi dans les tons roux ! D’un roux plutôt blanc à un roux tout foncé en passant par les échiquiers blanc-roux et roux-blanc (regardez donc là dessous comme ils sont beaux).

Pour ceux qui se poseraient la question... Les couleurs chez les pigeons sont dues à des pigments particuliers qu'on appelle la mélanine. Cette molécule est la même que celle qui pigmente notre peau et notre poil. Il en existe deux types: l'eumélanine, qui est à l'origine de la couleur noire/brune, et la phéomélanine, qui est contenue dans la cellule et de la quantité de pigment total contenue, d'où la gamme de nuance de couleur de pigeon qu'on retrouve dans la Nature.


Alors … une ou plusieurs espèces ?
Trêves de suspens, il faut que je vous dise tout maintenant !
Darwin, suite à de longues réflexions et expérimentations en est arrivé à la conclusion que toutes les variétés de pigeons étaient différente races, mais de la même espèce. Ses arguments ? Et bien les voilà :
- Il aurait été difficile pour les hommes de domestiquer 7 ou 8 espèces différentes et de les faire se reproduire librement
- La domestication remonte à des temps anciens et dans des régions très variées et la sélection de caractères a eu le temps d’opérer de diverses façons sur l’espèce
- Ces espèces supposées ne sont connues nulle part à l’état sauvage et les espèces domestiques ne semblent jamais être revenues à l’état sauvage
- Les variétés présentent des « caractères très anormaux » par rapport aux autres espèces de colombidés mais en revanche elles présentent beaucoup de points communs avec les pigeons bisets
- Les couleurs bleues et les marques noires réapparaissent dans toutes les variétés qu’on les conserve pures ou qu’on les croise
- Les hybrides sont féconds

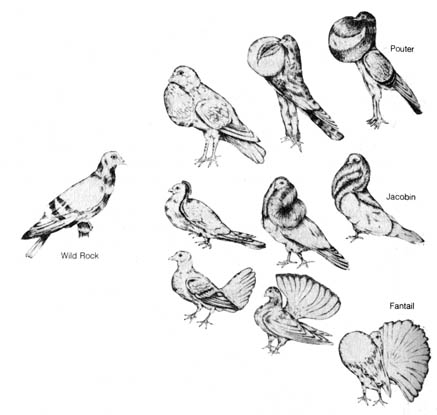
Un dessin des races issues du pigeon biset (http://www.ibri.org/Books/Pun_Evolution/Chapter3/fig3-06.jpg)

Ainsi, l’ensemble des variétés de pigeons seraient, selon Darwin, issus du pigeon biset, Columba livia à robe grise avec 2 barres bleues/noires à l’extrémité basse des ailes. Je vous en ai parlé tout à l’heure en vous décrivant les différentes couleurs de pigeon qu’on voyait à Paris. Effectivement un grand nombre des oiseaux qu’on voit tous les jours ressemblent comme deux gouttes d’eau au pigeon biset sauvage, alors qu’ils sont en fait des pigeons domestiqués. Le pigeon biset sauvage nicherait au bord des précipices (est-ce que ça n’aurait pas un lien avec leur aisance à voltiger entre les grands immeubles qu’on trouve en ville? A cogiter !) et serait doué d’un vol puissant. Il se pourrait que certains oiseaux sauvages persistent encore sur les côtes de la Méditerranée.
Voilà un pigeon qui aurait les caractéristiques du pigeon biset sauvage!


Différentes couleurs... Et alors?
Maintenant qu’on sait que tous ces piafs sont de la même espèce et pourquoi il y en a de différentes couleurs, je suis sûre que vous voulez savoir ce que ça change pour un pigeon d’être noir, gris, blanc, ou roux. Les chercheurs émettent beaucoup d’hypothèses à l’heure actuelle et sont en train de les vérifier une à une. Je vais vous présenter certaines de ces hypothèses :
-Selon la couleur, un pigeon ne serait pas attaqué de la même façon par les parasites. En effet, les observations montre que plus un pigeon est foncé et plus il porterait de parasite dans ces plumes. Mais ça n’affecterait pas son état de santé pour autant. On pourrait penser que c’est parce qu’il est plus résistant que les pigeons clairs, non ?! Vous vous demandez pourquoi les pigeons noirs sont plus parasités? Peut-être parce qu’ils fréquentent des lieux où les parasites sont plus denses, il s’agirait donc d’une différence de comportement entre les oiseaux clairs et sombres... La question reste à éclaircir!
-Les pigeons de couleur sombre seraient plus gros! Les chercheurs pensent que soit ils arriveraient à mieux se nourrir que les pigeons clairs (ils passent plus de temps à chercher à manger, ou alors c’est qu’ils ont une force de persuasion plus forte face aux petits moineaux dans la lutte pour les miettes de pain!), soit ils alloueraient la plus grande partie de l’énergie acquise par l’alimentation dans la croissance.
-Les pigeons les plus foncés semblent stocker plus de métaux lourds dans leurs plumes. Les chercheurs pensent qu’il y aurait un rapport avec les pigments présents dans leurs plumes (la mélanine est une molécule qui a beaucoup d’affinité pour certains métaux lourds) et peut-être aussi avec leur meilleur capacité à se nourrir (c’est logique que s’ils mangent plus, ils ingèrent plus de cochonnerie aussi!)
-Des études menées aux Etats-Unis ont montré que les pigeons qui avaient des plumes blanches étaient beaucoup plus soumis à leur prédateur naturel en milieu urbain que ceux qui étaient entièrement colorés. Une des hypothèses est qu’un plumage sombre permet de mieux se camoufler au milieu de la grisaille de la ville que les plumes blanches.
-Théoriquement, le taux de reproduction des mâles foncés devrait être plus important que celui des mâles blancs car le processus de production de la mélanine implique la production d’une hormone mâle, la testostérone. Cette hormone est connue pour son rôle dans la reproduction.
J’espère que maintenant, quand vous prendrez quelqu’un pour un pigeon, vous y réfléchirez à deux fois et surtout vous n’oublierez pas de penser à sa couleur ;)

Pour finir :

- Un petit court-métrage de Sylvain Chomet :
- Deux extraits d’une vidéo sur les pigeons à Paris proposé par Natural Movement et Anne Caroline Prévot Julliard (chercheur du Muséum National d’Histoire Naturelle) :
- L’Origine des Espèces disponible en ligne en version anglaise :
- Un site sur les pigeons dont Darwin a parlé (en anglais of course !) :
- Un site internet sur Charles Darwin et l’Evolution :
- Un article cousin de celui là, mais qui parle surtout des différentes morphologies de pigeon :

Biblio
-Darwin (1859) On the Origin of Species
-Johnson et Janiga (1995), The feral Pigeon, Oxford University Press
-Ducrest, Keller, Roulin (2008) Pleiotropy in the melanocortin system, coloration and behavioural syndromes, Trends in Ecology and Evolution, 23/9: 502-510.
-Karimi (2010) rapport de stage au laboratoire Ecologie et Evolution
-Jacquin, Lenouvel, Haussy, Ducatez, Gasparini (2011) Melanin-based coloration is related to parasite intensity and cellular immune response in an urban free living bird: the feral pigeon Columba livia, Journal of Avian Biology, 42/1:11-15.

samedi 7 janvier 2012

Touche pas à mes supermatozoïdes

Qui n’a jamais entendu parler de sélection naturelle ? Mais si, vous savez, quand un individu a quelque chose que les autres de son espèce n’ont pas (des cornes pour se défendre, des yeux pour mieux repérer ses proies…) et qu’il parvient à mieux survivre, il a le temps d’engendrer plus de descendants. Et si ce trait est héréditaire, ses enfants seront aussi plus aptes à survivre que les autres et le trait sera susceptible de se répandre peu à peu à l’ensemble de la population, au fil des générations. C’est Charles Darwin qui a suggéré cette théorie de la sélection naturelle. En fait, Wallace avait fait la découverte exactement à la même époque, mais quand il a demandé l’avis du grand Darwin avant de sortir un article, ce dernier s’est empressé de publier son fameux livre L’origine des espèces. Et même si Darwin a également présenté les travaux de Wallace avant cette publication, l’histoire n’a retenu que lui, tout du moins aux yeux du grand public…
 
Mais revenons à notre sélection naturelle. Il y a quelque chose qui ne colle pas avec cette théorie. Comment expliquer par exemple la longue traîne du paon, qui est très voyante aux yeux des prédateurs et qui en plus a l’air handicapante pour voler ? Darwin répond lui-même à ce problème en invoquant ce qu’il appelle la sélection sexuelle. Si les femelles préfèrent les mâles colorés, ce sont ceux-ci qui se reproduiront le plus. Ainsi, chez de nombreuses espèces d’oiseaux, les femelles choisissent les mâles aux couleurs les plus chatoyantes, ce qui explique le fort dimorphisme observé (les femelles sont quant à elle souvent ternes et se confondent avec l’environnement). De même, si certains mâles parviennent à s’accaparer toutes les femelles, par exemple à l’issu d’un combat avec les autres mâles, ils auront le monopôle de la reproduction. L’exemple le plus frappant est peut être celui des harems, comme chez les éléphants de mer, où à l’issu d’un combat sanglant, le mâle victorieux s’accapare plusieurs dizaines de femelles.
 
Les choses semblent ainsi assez simples : plus un mâle est sexy ou fort, plus il pourra avoir accès à un nombre important de femelles, et donc plus il donnera de descendants (indépendamment de sa capacité à survivre qui est évidemment un paramètre crucial). Mais pas si vite, est-ce que copuler avec une femelle certifie de sa future paternité ? Pas si sur. En effet, chez beaucoup d’espèces, les femelles copulent avec plusieurs mâles avant de donner naissance. Et cette propriété ouvre les portes à une compétition plus discrète : la compétition spermatique.
 
Compétition spermatique ? Est-ce que les spermatozoïdes des mâles essaieraient de s’entre-tuer ? Eh bien, c’est à peu près ça.
 
Il y a de nombreuses formes de compétition spermatique, des plus simples aux plus extravagantes. Les mâles peuvent tout d’abord essayer de supprimer le sperme de leurs prédécesseurs, de manière chimique ou mécanique. Les drosophiles, par exemple, libèrent une toxine pour détruire les spermatozoïdes concurrents. A noter que ces toxines sont aussi néfastes pour la femelle et diminuent leur espérance de vie… Beaucoup d’odonates (libellules, agrions, etc.) possèdent une morphologie particulière du pénis avec des structures spécialisées (épines, soies, barbillons), leur permettant de racler le tractus génital de la femelle pour faire place nette.

 
Un pénis d'odonate (CCS Bio Blog)


Les mâles peuvent aussi diluer le sperme rival en inséminant une plus grande quantité de spermatozoïdes.
 
Une fois le sperme déposé dans le tractus génital de la femelle, les mâles ont tout intérêt à empêcher les autres mâles de copuler avec madame. Certains s’accrochent à la femelle jusqu’à la fécondation, effectuant ainsi ce qu’on appelle du gardiennage post-copulatoire. C’est pour cette raison que les mâles agrion restent littéralement accrochés à leur partenaire jusqu’à la ponte. Mais ce procédé empêche le mâle d’aller inséminer d’autres femelles pendant ce temps. D’autres mâles s’assurent de leur paternité en inhibant la réceptivité sexuelle de la femelle après leur passage. Chez de nombreux moustiques (par exemple Anopheles spp), les mâles transfèrent une substance dans leur liquide séminal qui rend la femelle non-réceptive quelques heures après l’accouplement. Chez d’autres espèces, de telles substances peuvent diminuer l’attractivité sexuelle de la femelle ou neutraliser les aphrodisiaques produits par d’autres mâles. C’est par exemple le cas chez certains papillons : bien que la femelle reste réceptive, les autres mâles ne sont plus attirés par elle.

 
Accouplement (à gauche) suivi de la ponte pendant laquelle le mâle reste fixé à la femelle (Crédits)


Les mâles peuvent aussi tout simplement obstruer les voies génitales de la femelle au moyen d’un bouchon spermatique, dont la composition est variable. Certains mâles (les bourdons par exemple) ont des glandes qui produisent une substance spéciale, une sorte de ciment qui forme une barrière à l’intromission. Chez des espèces de fourmis, le mâle sacrifie ses organes copulatoires pour boucher le tractus génital de la femelle. Enfin, Baker et Bellis ont proposé en 1988 « l’hypothèse des spermatozoïdes kamikazes », selon laquelle les spermatozoïdes non fécondants des mammifères aideraient à la formation d’un bouchon copulatoire. Cette hypothèse est cependant très controversée.
 
Ceci nous amène à une autre conséquence de la sélection spermatique : la diversité des formes de spermatozoïdes. Chez certains rongeurs par exemple, la tête des spermatozoïdes a une forme de crochet, ce qui leur permet de s’agréger en petits groupes et d’augmenter leur vitesse de déplacement.

 
A gauche, des têtes de spermatozoïdes de rongeurs en forme de crochets, qui permettent aux spermatozoïdes d'un même mâle de s'agglutiner (à droite). Les deux couleurs indiquent l'appartenance à deux mâles différents.


Mais une des conséquences les plus impressionnantes de la compétition spermatique reste peut être le géantisme des spermatozoïdes de la mouche Drosophila bifurca. Le mâle de 3 mm est capable de produire des spermatozoïdes longs de 58 mm. Ramené à l’échelle humaine, cela équivaudrait pour un homme à produire des spermatozoïdes de 30 mètres de longs… Ceux-ci forment des boules denses qui occupent toute la largeur du tractus génital de la femelle. Le premier mâle à copuler a donc la certitude de féconder autant d’œufs que de spermatozoïdes libérés.

 
A gauche, un mâle Drosophila bifurca entouré d'un des impressionnants testicules qui produisent les spermatozoïdes géants. Ces testicules représentent 11% de la masse du corps du mâle. Le mâle transfert les spermatozoïdes sous forme enroulée (Crédits).
 
Un seul spermatozoïdes de drosophile (Drosophila bifurca) sous sa forme compacte, enroulé sur lui-même (Crédits).


De nombreuses autres stratégies existent dans la compétition spermatique. Cette guerre est en effet de la plus haute importance puisqu’elle constitue la dernière étape, cruciale, avant d’accéder à la fécondation. Si les exemples que je viens de citer sont les plus représentés dans le monde animal, certaines espèces s’illustrent par l’originalité de leurs pratiques. Les punaises des lits (Cimex lectularius) sont peut être les championnes dans ce domaine : les mâles ont des comportements homosexuels et, à la manière d’une seringue, utilisent leur pénis perforateur pour injecter leur semence dans les corps d’autres mâles. Ces derniers, quand ils insémineront des femelles, injecteront au passage le sperme du mâle « parasite »…

 
Le pénis perforateur de la punaise (à gauche) permet au mâle d'inséminer la femelle dans n'importe quelle partie du corps... parfois même dans la tête ! (Crédits)
 
Références :
D'autres articles pour aller plus loin :
Related Posts Plugin for WordPress, Blogger...